L’origine de la forme fractale du chou-fleur et du chou romanesco est désormais éclairée grâce à des analyses des contrôles génétiques à l’origine de cette structure particulière. Un dérèglement moléculaire empêche les bourgeons de fleurir et entraîne leur multiplication infinie, donnant naissance à des formes qui se répètent à différentes échelles. Les mutations génétiques responsables altèrent l’équilibre entre les états “tige” et “fleur” dans les bourgeons et expliquent la croissance continue des structures.
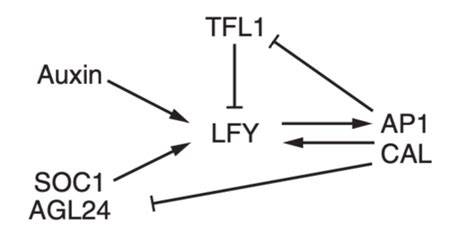
Pour comprendre ces mécanismes, les chercheurs ont utilisé Arabidopsis thaliana comme espèce modèle, species modèle choisie pour sa petite taille et son cycle de développement rapide, facilitant l’étude des mutations qui modifient l’identité des bourgeons. Chez Arabidopsis, deux mutations conduisent à des structures ressemblant à des choux, indiquant que la balance entre les gènes de tige et de fleur est cruciale pour la morphogenèse des inflorescences. Les gènes AP1 et CAL, lorsqu’ils deviennent non fonctionnels, permettent que l’architecte floral LFY active d’autres gènes floraux et que le bourgeon échappe à l’inhibition par TFL1, favorisant une progression vers la floraison.
En l’absence de l’inhibition normale, l’activation de LFY déclenche une cascade qui inverse l’état du bourgeon; néanmoins le passage à l’état floral n’est pas réversible dans ce contexte, entraînant une croissance continue et une production répétée de nouveaux bourgeons qui se transforment en bourgeons de tige, puis en bourgeons floraux sans aboutir à une fleur mature. Cette contraction de l’identité des bourgeons sous l’influence des mutations explique la formation d’une architecture fractale où les bourgeons engendrent des tiges et des fleurs de manière auto-similaire.
Le chou romanesco se distingue par l’aspect pyramidale des fleurettes, qui accentue et révèle la structure fractale. Une étude menée en 1998 par Kieffer et al. avait montré que la différence réside dans un rythme de production des bourgeons, stable chez le chou-fleur et accéléré chez le romanesco. Des simulations numériques et des expérimentations sur Arabidopsis indiquent que ce rythme croissant au cœur des bourgeons romanesco accélère la croissance de chaque florette et confère l’effet pyramidal typique. Le processus de domestication humaine a aussi joué un rôle en sélectionnant des mutations favorisant ces formes particulières.
Le guide moléculaire de cette guerre de territoire entre “garde de la tige” et “architecte floral” est complexe. Le gène TFL1 agit comme gardien en maintenant l’état tige, tandis que LFY, lorsqu’il est activé, appelle des gènes floraux qui bloquent l’influence de TFL1 et conduisent à la floraison. Parmi ces gènes apparaissent AP1 et CAL, qui, lorsqu’ils deviennent non fonctionnels, empêchent TFL1 d’exercer son rôle inhibiteur, poussant les bourgeons vers l’état floral et provoquant une cascade qui transforme partiellement les bourgeons en tiges et en bourgeons floraux récurrents. Ce mécanisme explique pourquoi les bourgeons, une fois entrés dans l’état floral, peuvent donner naissance à des structures qui se régénèrent indéfiniment en bourgeons de tige et en bourgeons floraux qui ne fleurissent jamais réellement.
Une approche intégrée associant expérimentation biologique, modélisation mathématique et simulation 3D du développement a permis de proposer une vue unifiée de ces interactions. En résumé, il s’agit d’une guerre de territoire où l’identité du bourgeon est déterminée par l’équilibre dynamique des gènes de tige et de fleur, et où la plasticité des interactions génétiques conduit à des architectures particulièrement répétitives et fractales.
Pour étudier directement les mécanismes qui régissent la formation de la pomme du chou-fleur, les chercheurs ont utilisé Arabidopsis comme modèle et ont pu démontrer que les perturbations de réseaux génétiques peuvent transformer les fleurs en structures qui ressemblent à des choux, révélant comment des mutations simples peuvent entraîner des architectures extrêmement complexes. Chez le chou-fleur et chez le romanesco, les deux formes sont issues d’un mécanisme fondamental semblable, même si le romanesco présente une accélération de la production des bourgeons et une multiplication plus rapide qui donne l’apparence pyramidale distinctive.
Les résultats apportent une compréhension intime de la façon dont l’activité des gènes se combine à la croissance pour donner l’apparence des plantes à fleurs, et révèlent la capacité des bourgeons de tige à se multiplier de manière extrême dans des conditions favorables. Cette connaissance ouvre des perspectives en recherche et en agronomie, offrant un cadre analytique pour identifier les mutations liées à la domestication qui façonnent les formes des choux-fleurs et du romanesco, et suggère des voies potentielles pour la domestication de nouvelles variétés présentant des avantages agronomiques et résistances accrues.
- Causes génétiques et modèle expérimental avec Arabidopsis thaliana.
- Rôle des gènes TFL1, LFY, AP1 et CAL dans l’identité bourgeon/tige.
- Impact des mutations et du rythme de production des bourgeons sur la fractalité.
- Comparaison entre chou-fleur et romanesco et implications en domestication.
En conclusion, les analyses publiées dans Science éclairent les mécanismes moléculaires et développementaux qui mènent à la formation de structures fractales chez le chou-fleur et le romanesco, ouvrant des perspectives interdisciplinaires pour la compréhension de la morphogenèse des choux et leur domestication future.